

Czytasz artykuł w trybie offline
Ewolucja zaczyna się od wyboru partnera


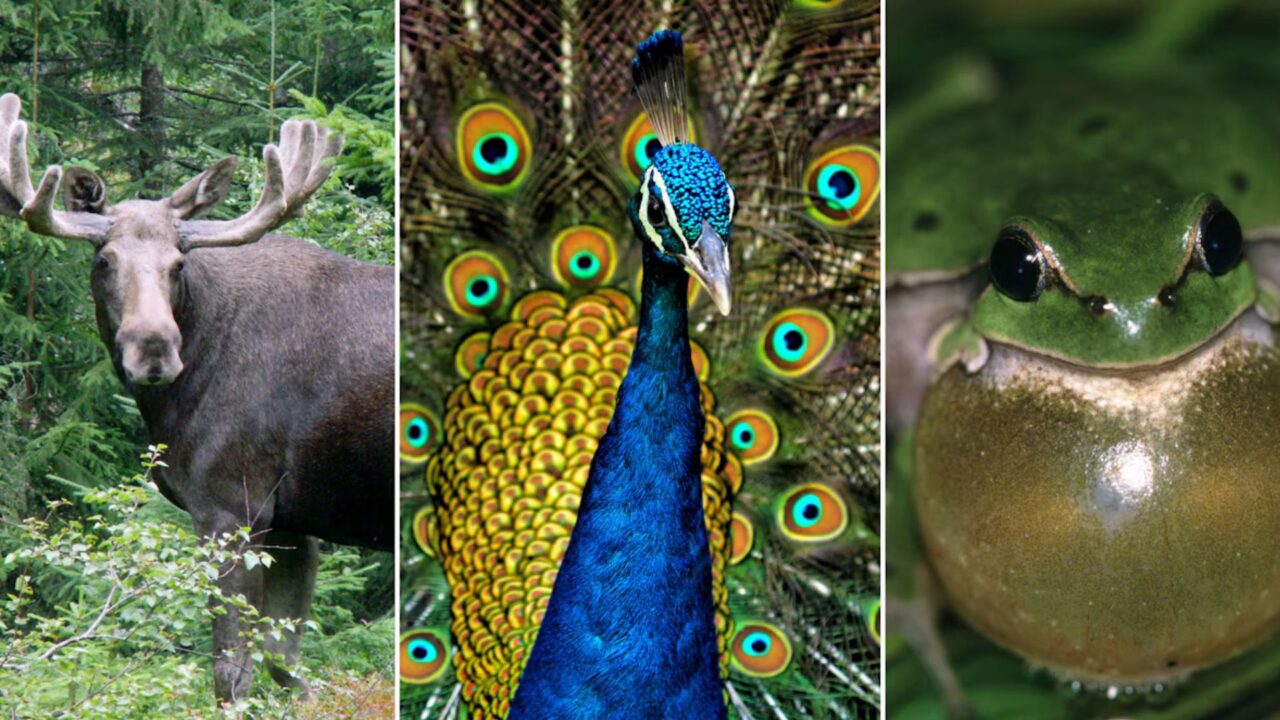
Czy preferencje dotyczące zachowań godowych mogą prowadzić do powstawania nowych gatunków? Fot. Badzil/Jatin Sindhu/Emmanuelle Pouivé i Glenn Yannic, materiały udostępnione przez autorów.
Zaloty odgrywają kluczową rolę w świecie zwierząt. W obrębie jednego gatunku może się jednak zdarzyć, że cechy cenione przy wyborze partnera różnią się w zależności od populacji. Czy takie różnice wystarczą, by powstały nowe gatunki?
Gdzieś w Europie Zachodniej jaskółka, która przyleciała z dalekiego wschodu, spotyka miejscowego samca. Obserwuje go i ocenia. Jego upierzenie na piersi jest zdecydowanie zbyt blade, by zainteresować samicę pochodzącą ze wschodniej populacji, w której cenione są bardziej intensywne barwy. Choć jaskółki potrafią pokonywać bardzo długie dystanse, osobniki z tych dwóch populacji rzadko się ze sobą krzyżują. Z zachodu na wschód ubarwienie samców i preferencje samic wyznaczają granice między grupami osobników – populacjami, podgatunkami albo gatunkami, zależnie od tego, jak przepuszczalne są te bariery.
Wiadomo, że różnicowanie się preferencji seksualnych przyczyniło się do powstania niezwykłej różnorodności gatunków obserwowanej dziś w świecie zwierząt. Wciąż pozostaje jednak wiele pytań. Dlaczego w jednej populacji preferowana jest jaśniejsza pierś, a w innej bardziej kolorowa? Jak powstaje izolacja płciowa między gatunkami? Jak się rozwija, aż doprowadzi do całkowitego rozdzielenia dwóch populacji, które stają się odrębnymi gatunkami?
Spróbujmy podsumować to, co już wiemy, i to, co nadal pozostaje zagadką.
Wyjątki, które wiele mówią o ewolucji
U wielu gatunków to samice wybierają samców, którzy starają się zaprezentować z jak najlepszej strony.
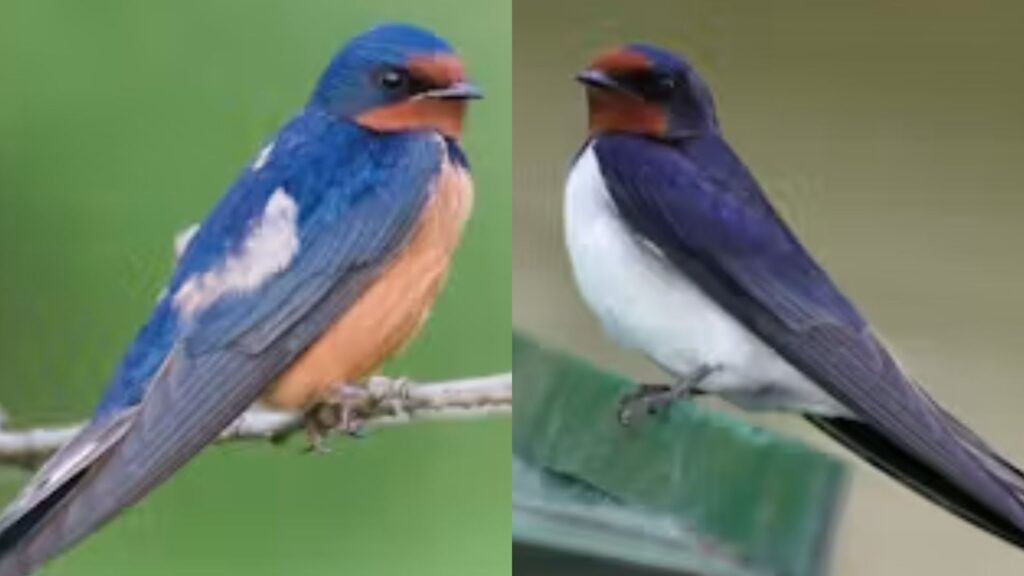
Dla samców stawka jest wysoka: liczba ich potomstwa w dużej mierze zależy od liczby partnerek seksualnych. Muszą więc być jak najbardziej atrakcyjni. Z kolei liczba potomstwa samic – u jaskółek jest to liczba zniesionych jaj – zależy przede wszystkim od ich własnej płodności. Dlatego samice powinny raczej maksymalizować jakość partnerów, na przykład ich udział w opiece nad potomstwem lub jakość przekazywanego materiału genetycznego, niż liczbę partnerów.
W świecie zwierząt samcom często przypada więc rola polegająca na zalotach, a samicom – na wyborze partnera. Ta ogólna zasada ma oczywiście wyjątki, zresztą bardzo pouczające dla badaczy ewolucji.
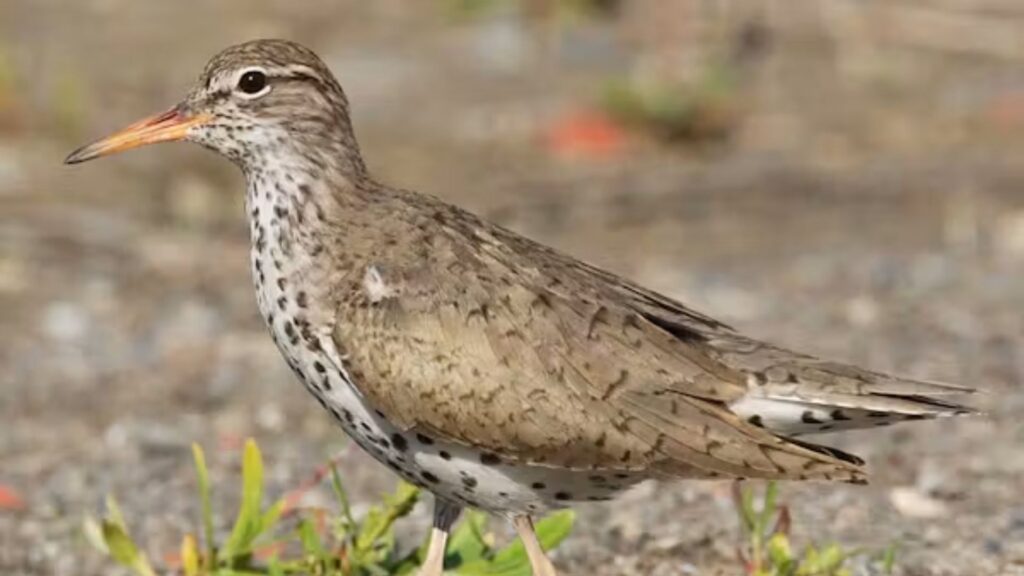
U brodźca plamistego, niewielkiego ptaka brodzącego z Ameryki Północnej, samice składają cztery jaja w lęgu, a następnie pozostawiają samcom opiekę nad nimi aż do wyklucia. Dzięki temu mogą podwoić, potroić, a nawet pięciokrotnie zwiększyć liczbę lęgów, z których każdy może mieć innego ojca.U tego gatunku, podobnie jak u kilku innych, u których role są „odwrócone” – wystarczy pomyśleć o samcach koników morskich inkubujących jaja – to samice rywalizują o dostęp do samców. W przypadku brodźca robią to zresztą wdając się w gwałtowne walki.
U większości zwierząt to jednak samce muszą się zaprezentować. Pokazują się za pomocą barw, śpiewu i zapachu. Samice wykorzystują wzrok, słuch, węch, a czasem także dotyk, by ich ocenić i wybrać partnera. Samice rzekotki drzewnej na przykład słuchają śpiewu samców i obserwują ich ubarwienie, podejmując decyzję wiosną. Najbardziej atrakcyjne cechy pozwalają niektórym samcom rozmnażać się z wieloma samicami, podczas gdy ich mniej uprzywilejowani rywale przekazują materiał genetyczny mniej skutecznie albo nie przekazują go wcale.
Z pokolenia na pokolenie
W następnym pokoleniu proces zaczyna się od nowa. Jeśli cechy samców mają przynajmniej częściowo dziedziczne podłoże genetyczne, synowie atrakcyjnie śpiewających samców również będą śpiewać nieco lepiej niż przeciętnie. Ich śpiew może być trochę niższy lub wyższy, bardziej złożony albo zaczynać się kilka milisekund wcześniej niż śpiew innych samców – nie ma to znaczenia, o ile jest bardziej pożądany.
Jeżeli córki tych samców odziedziczą również preferencję dla określonego rodzaju śpiewu, pętla się zamyka: cechy płciowe samców i preferencje samic mogą ewoluować wspólnie, a nawet wbrew doborowi naturalnemu. Dzieje się tak na przykład wtedy, gdy przewaga rozrodcza głośnego i wyraziście ubarwionego samca jest tak duża, że przewyższa niekorzyść polegającą na łatwiejszym przyciąganiu krążącego w pobliżu drapieżnika.
Taka koewolucja prowadzi czasem do powstawania cech, które wydają się całkowicie nieracjonalne: pawiego ogona, ciężkiego poroża łosia, które co roku odpada i odrasta jeszcze większe, podarunków godowych niektórych owadów czy ozdobnych konstrukcji australijskich altanników, służących jako tło dla ich zalotów.
Czy sygnał musi być wiarygodny?
Często sygnał, na podstawie którego samica dokonuje wyboru, jest wiarygodny: najbardziej atrakcyjna rzekotka przekazuje potomstwu również dobre geny, co przejawia się między innymi szybszym wzrostem kijanek. Wybierając określony rodzaj śpiewu, samica zwiększa więc szanse przeżycia swojego potomstwa.
Modele teoretyczne sugerują jednak, że sygnał wcale nie musi wskazywać na „dobre geny” ani na „geny kompatybilne” z materiałem genetycznym partnera. Choć nigdy nie wykazano tego w pełni w warunkach naturalnych, jest całkiem możliwe, że korzyść z wyboru samicy polega czasem wyłącznie na tym, że jej synowie będą mieli przewagę, gdy sami będą musieli zabiegać o partnerki.
Preferencje różniące się między populacjami
Dobór płciowy kieruje więc cechy samców i preferencje samic ku czerwieni, żółci, wyraźnemu kontrastowi, niższym dźwiękom, bardziej złożonym zalotom, intensywnemu lub wieloskładnikowemu zapachowi. Wszystko to dzieje się w obrębie jednej populacji.
W innej populacji te same kryteria wyboru mogą jednocześnie ewoluować w innym kierunku – być może nieco dalej, być może na obszarze odizolowanym i nadającym się do zamieszkania podczas epoki lodowej. Kiedy osobniki z obu populacji ponownie się zetkną, mogą się już ze sobą nie rozmnażać.
Czy dzieje się tak wyłącznie dlatego, że różnią się kryteriami atrakcyjności? Innymi słowy: czy same gusta i preferencje mogą doprowadzić do powstania dwóch odrębnych gatunków? A może zanim obie populacje ponownie się spotkają, zdążą już nagromadzić mutacje, które okażą się niezgodne? W takim przypadku wybór partnera rozwijałby się wtórnie, ponieważ osobniki unikałyby zbyt odmiennych przedstawicieli własnego gatunku, z którymi krzyżowanie prowadziłoby do powstania niewielkiej liczby zdolnych do przeżycia lub płodnych potomków. Zjawisko to nazywa się wzmocnieniem wyboru partnera.
Testowanie hipotez na skorupiakach
Aby przetestować te ogólne hipotezy, potrzebujemy gatunków, które można obserwować, a najlepiej również poddawać eksperymentom. W stacji biologicznej w Roscoff wybraliśmy niewielkie morskie równonogi z grupy Jaera albifrons. Te drobne skorupiaki żyją wzdłuż wybrzeży.
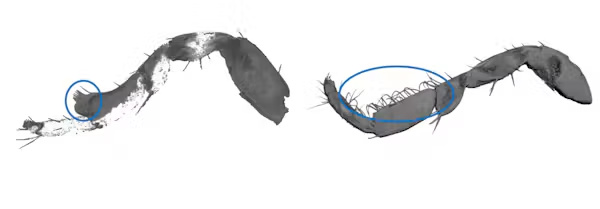
U tych gatunków samce przeczesują grzbiet samic za pomocą niewielkich struktur przypominających do złudzenia włoski. Są to szczecinki godowe, występujące na niektórych z siedmiu par odnóży. Mają je wyłącznie samce i służą one tylko do zalotów. U jednego z gatunków samce wykorzystują krótkie, gęste szczecinki zgrupowane w szczotki na dwóch najbardziej tylnych parach odnóży. U innego występują długie, zakrzywione i bardziej elastyczne szczecinki, umieszczone na czterech najbardziej przednich parach odnóży. Samce przeczesują grzbiet samic. Samice wybierają partnera.
Na europejskich wybrzeżach występują cztery gatunki równonogów z grupy Jaera albifrons. Często żyją w tym samym środowisku, pod tymi samymi kamieniami odsłanianymi podczas odpływu. Różnią się wyłącznie ułożeniem szczecinek i sposobem, w jaki samce przeczesują nimi grzbiet samic. Jak do tego doszło?
Wyjątkowy eksperyment
Aby odpowiedzieć na to pytanie, stworzyliśmy od podstaw populacje doświadczalne. Obecnie analizujemy potomstwo kilkudziesięciu samców i samic dwóch gatunków, występujących w równych proporcjach. Czy sukces rozrodczy samca wśród samic własnego gatunku zależy od jakości jego szczecinek? Odpowiedź pozwoli nam zrozumieć, jak działa dobór płciowy w obrębie każdego gatunku. Czy następnie te same cechy samców decydują o ich powodzeniu u samic drugiego gatunku? Odpowiedź pomoże ustalić, czy procesy wyboru zachodzące w obrębie poszczególnych gatunków przyczyniły się do obecnej izolacji płciowej między nimi.
Duża część naszej pracy polega również na analizie zmienności genetycznej tych gatunków. Chcemy zrozumieć, w jaki sposób określone cechy płciowe są uwarunkowane i jak ewoluują.
Oprócz izolacji płciowej warto zauważyć, że na naszych wybrzeżach wykorzystywane przez nas w badaniach małe skorupiaki często występują razem, ale nie zawsze. Jeden gatunek może na przykład – przynajmniej w pewnym regionie – preferować kamyki, po których podczas odpływu spływa słodka woda z lądu, podczas gdy inne osobniki można znaleźć poza strefami, w których zasolenie jest niższe. Jeszcze inny gatunek może żyć przede wszystkim na określonych brunatnicach, a nie pod kamieniami. Takie różnice w niszach ekologicznych również mogą przyczyniać się do izolacji rozrodczej osobników.
W rzeczywistości sama izolacja płciowa prawdopodobnie nie wystarcza, by powstały dwa wyraźnie odrębne gatunki. Łączy się kilka barier, a ich zakres jest bardzo szeroki: specjalizacja w nieco innych siedliskach, przesunięcie sezonu rozrodu, niezgodności genetyczne. Te półprzepuszczalne granice, nakładając się na siebie, mogą ostatecznie uniemożliwić wymianę genów między dwiema populacjami. Z czasem stają się one dwoma gatunkami potomnymi wywodzącymi się od jednego gatunku przodków.
Wciąż pozostaje jednak pytanie o pochodzenie gatunków: która bariera zapoczątkowała ten proces? Choć trudno rozwikłać tę zagadkę, jedno jest pewne: ewolucja napędzana zaciętą rywalizacją o możliwość rozmnażania się w znacznym stopniu przyczyniła się do niezwykłego zróżnicowania zwierząt i roślin kwiatowych.
Artykuł „L’évolution des préférences sexuelles peut‑elle créer de nouvelles espèces?” został opublikowany w serwisie The Conversation.
jest całkiem możliwe, że korzyść z wyboru samicy polega czasem wyłącznie na tym, że jej synowie będą mieli przewagę, gdy sami będą musieli zabiegać o partnerki


